









| 查看: 54 | 回复: 3 | |||
| 【有奖交流】积极回复本帖子,参与交流,就有机会分得作者 乐备实LabEx 的 2 个金币 ,回帖就立即获得 1 个金币,每人有 1 次机会 | |||
[交流]
蛋白翻译后修饰:解码细胞功能调控的分子密码
|
|||

|
一、基因序列之外:被忽视的蛋白功能调控层 人类基因组大约编码两万种蛋白质,但这两万种远不足以解释细胞生命活动的复杂性。同一个基因转录出的mRNA,经过不同的剪接方式可以产生多种转录本;而同一种蛋白质,在翻译完成之后还会经历一系列化学修饰——磷酸化、乙酰化、泛素化、甲基化、糖基化、琥珀酰化、乳酸化……这些修饰就像给蛋白质打上不同的“功能标签”,决定了它在什么时间、什么位置、以什么活性状态发挥作用。 翻译后修饰(Post-Translational Modification,PTM)指的是蛋白质在翻译后,通过共价基团的添加或剪切来改变其结构与功能的过程。据估计,人类蛋白质组中存在超过两百种不同类型的翻译后修饰。一个蛋白质分子可以同时携带多种修饰,这些修饰之间还存在交叉调控和优先级竞争——同一个赖氨酸残基上,乙酰化、泛素化、琥珀酰化和乳酸化可能在相互竞争,决定蛋白质最终的命运。这种修饰组合的多样性,使得两万种基因能够编码出功能差异巨大的蛋白质组——这就是为什么蛋白质组的复杂度远远超过转录组。 PTM研究在过去十年经历了从“小众”到“主流”的转变。早期的PTM研究主要集中在磷酸化和泛素化两种经典修饰上,但随着质谱技术和修饰特异性抗体的发展,越来越多新型修饰被发现与疾病直接相关。琥珀酰化连接了代谢状态和炎症通路,乳酸化把Warburg效应和基因转录重编程联系在一起,这些发现彻底改变了研究者对代谢物功能的认知——代谢物不只是能量货币和合成前体,它们本身就是信号分子,通过修饰蛋白质来直接调控细胞命运。 二、五大核心翻译后修饰类型 (1)磷酸化:信号转导的分子开关 磷酸化是目前研究最深入、与疾病关联最明确的翻译后修饰类型。蛋白激酶将ATP上的磷酸基团转移到底物蛋白的丝氨酸、苏氨酸或酪氨酸残基上,给蛋白质加上一个带负电的修饰。这个负电荷足以改变蛋白质的局部电荷分布和构象——酶被激活或失活,蛋白之间的相互作用被增强或阻断,蛋白质在细胞内的定位发生改变。整个过程是可逆的:蛋白磷酸酶负责把磷酸基团去掉,恢复蛋白质的基线状态。激酶和磷酸酶之间的动态平衡,构成了细胞内信号转导的核心调控网络。 人类基因组编码了大约五百多种蛋白激酶和大约两百种蛋白磷酸酶,它们组成了一个庞大的信号传导网络。这个网络一旦失衡,细胞的增殖、分化、凋亡和代谢就会失控——这在肿瘤中表现得最为典型。伊马替尼(格列卫)作为第一个成功上市的小分子激酶抑制剂,靶向BCR-ABL融合激酶治疗慢性粒细胞白血病,开创了肿瘤精准治疗的时代。此后,EGFR抑制剂、BRAF抑制剂、CDK4/6抑制剂等一大批靶向药物相继上市,它们的作用机制都是干预特定蛋白的磷酸化状态。除了肿瘤,磷酸化失衡还与炎症性疾病、心血管疾病和神经退行性疾病密切相关——tau蛋白的过度磷酸化是阿尔茨海默病的标志性病理特征。 (2)乙酰化:从染色质松弛到代谢酶调控 乙酰化最初被发现于组蛋白N端尾巴上。组蛋白乙酰转移酶(HAT)将乙酰基团加到组蛋白赖氨酸残基上,中和赖氨酸的正电荷,削弱组蛋白与带负电DNA之间的静电相互作用,使染色质结构变得松弛,转录机器更容易接近DNA——这就是乙酰化促进基因转录的经典模型。去乙酰化酶(HDAC)则把乙酰基团去掉,使染色质重新紧缩。伏立诺他和罗米地辛是最早获批上市的HDAC抑制剂,用于治疗皮肤T细胞淋巴瘤,其机制就是通过抑制去乙酰化,维持染色质开放状态,诱导肿瘤细胞凋亡。 但乙酰化的作用远不止于组蛋白。后续研究发现,大量非组蛋白——包括p53、NF-κB亚基、HIF-1α等关键转录因子和代谢酶——的活性也受到乙酰化的精细调控。p53的乙酰化状态决定了它是促凋亡还是促衰老;HIF-1α的乙酰化影响其蛋白稳定性和转录活性。BET抑制剂通过阻断溴结构域蛋白对乙酰化组蛋白的识别,在不直接改变乙酰化水平的情况下阻断下游转录程序,这是表观遗传药物研发的另一条重要路线。 (3)泛素化:降解标签与信号分支 泛素是一个由76个氨基酸组成的小蛋白,它通过E1-E2-E3酶级联反应被共价连接到底物蛋白的赖氨酸残基上。最经典的泛素化功能是作为蛋白质降解标签——被K48连接的多聚泛素链标记的蛋白质,会被蛋白酶体识别并降解。这个过程控制着细胞内几乎所有短命蛋白的丰度,从细胞周期蛋白到抑癌基因p53,都受泛素-蛋白酶体系统的精密调控。 但泛素化并不只意味着降解。泛素分子上有七个赖氨酸残基,可以通过不同的连接方式形成不同拓扑结构的多聚泛素链。K63连接的泛素链不介导降解,而是作为信号平台招募下游分子——在NF-κB信号通路中,K63泛素链是激活IKK复合物的关键信号支架。这种分支链的精细功能分工,使得泛素化系统同时承担了蛋白质量控制和信号转导双重角色。去泛素化酶(DUBs)负责把泛素链从底物上切掉,逆转泛素化的效应,这一类酶正在成为肿瘤药物研发的新兴靶点。PROTAC(蛋白降解靶向嵌合体)技术更是直接利用了泛素化系统——通过一个双功能分子同时结合目标蛋白和E3连接酶,人为给目标蛋白加上泛素标签,让蛋白酶体把它降解掉。这种技术可以靶向传统药物无法“drug”的蛋白。 (4)琥珀酰化:代谢-炎症的电荷传感器 琥珀酰化是近年来发现的一种新型赖氨酸修饰。琥珀酰辅酶A(来自三羧酸循环)将琥珀酰基团转移到蛋白质的赖氨酸残基上,把赖氨酸原本带的正电荷(+1)变成负电荷(-1)。这种电荷变化的幅度非常大——从+1到-1,跨度为两个电荷单位,远大于乙酰化(从+1到0,跨度一个单位)。如此剧烈的电荷翻转,足以显著改变蛋白质的局部结构和酶活性。 琥珀酰化与代谢状态直接挂钩:当细胞内琥珀酰辅酶A水平升高时——比如高血糖条件下TCA循环流量增加——蛋白质的琥珀酰化水平随之上升。SIRT5和SIRT7作为去琥珀酰化酶,负责清除这种修饰。在炎症反应中,琥珀酰化的代谢酶失去活性,TCA循环中间产物积累,进而促进NLRP3炎症小体的激活和IL-1β的释放。这条通路把高血糖、缺氧等代谢应激和NF-κB介导的炎症反应直接联系起来,为糖尿病和肥胖相关的慢性炎症提供了分子解释。 (5)乳酸化:代谢-表观的桥梁 乳酸化是2019年才被正式报道的一种新型组蛋白修饰。肿瘤细胞在有氧条件下依然偏好糖酵解——这就是Warburg效应。大量葡萄糖被转化为乳酸排出胞外,肿瘤微环境因此长期处于高乳酸状态。最初研究者认为乳酸只是代谢废物,但张裂团队的工作揭示了一个全新的机制:乳酸可以直接作为底物,将组蛋白赖氨酸乳酸化,从而改变基因转录程序。 这一发现把细胞的代谢状态和基因表达直接联系了起来——糖酵解产生的乳酸越多,组蛋白乳酸化水平越高,特定的基因转录程序被启动。在巨噬细胞中,组蛋白乳酸化驱动了M2样修复基因的表达,帮助肿瘤逃脱免疫监视。在非组蛋白层面,HIF-1α的乳酸化可以阻断VHL介导的泛素化降解,延长HIF-1α的蛋白半衰期,进一步放大缺氧应答。乳酸化的发现开辟了“代谢-表观遗传学”这一新方向,也为肿瘤微环境研究提供了新的分子抓手。 三、PTM研究的实验技术 (1)Western Blot:修饰检测的基石 Western Blot是检测蛋白翻译后修饰最经典、最常用的实验手段。核心思路很直接:用修饰特异性抗体识别目标蛋白上的特定修饰位点。比如检测Akt的磷酸化,使用phospho-Akt(Ser473)特异性抗体——这种抗体只识别473位丝氨酸被磷酸化的Akt蛋白,不识别总Akt。实验中通常需要同时跑两块胶或Strip后重探——一块用磷酸化抗体检测修饰水平,另一块用总蛋白抗体检测总蛋白表达量。磷酸化信号除以总蛋白信号,得到的是“修饰/总蛋白”比值,这才是反映修饰动态变化的准确读数。 做磷酸化WB有几个实操要点容易被忽视。样品裂解时必须加足量的磷酸酶抑制剂(如NaF、Na3VO4、β-甘油磷酸钠),否则蛋白样品在冰上放置的过程中磷酸基团就被内源磷酸酶水解掉了。组织样本取材后要快速冻存或直接裂解,延迟超过几分钟就可能导致磷酸化信号显著衰减。对于泛素化和乙酰化检测,裂解液中需要加入去泛素化酶抑制剂和去乙酰化酶抑制剂(如TSA、NAM),防止修饰在样品处理过程中被逆转。 (2)抗体芯片:多靶点平行筛查 Western Blot一次只能看一个或几个蛋白的修饰状态。但信号通路是网络化的——检测一个磷酸化靶点的变化,往往需要同时看上下游十几个甚至几十个蛋白的磷酸化水平,才能理清通路的激活状态。抗体芯片(Antibody Array)正是为解决这一需求而设计的。 抗体芯片的原理和ELISA类似:将几十到上百种针对特定通路蛋白的抗体点印在同一张膜上,与裂解液孵育后,目标蛋白被对应抗体捕获,再用混合检测抗体或荧光二抗进行显色。一张芯片可以同时定量几十个蛋白的表达量或磷酸化水平。乐备实提供的抗体芯片Panel覆盖了RTK磷酸化(49因子)、磷酸激酶(41因子)、免疫受体磷酸化(59因子)、泛素(49因子)、NF-κB信号通路(45因子)、肿瘤研究(84因子)等多个功能方向,人源和小鼠种属均有成熟产品。对于药物筛选和机制研究中需要一次性观察多条信号通路变化的场景,抗体芯片比逐个做WB效率高得多——一次上样就能获得几十上百个靶点的修饰数据,再结合Western Blot对关键靶点做验证,是目前PTM研究中性价比最高的实验策略。 四、PTM研究的疾病应用领域 (1)肿瘤 肿瘤是PTM研究最活跃的领域。激酶信号通路的异常磷酸化是肿瘤增殖和存活的核心驱动力——EGFR、HER2、MET、ALK等受体酪氨酸激酶的突变或过表达,导致下游RAS-MAPK和PI3K-AKT通路持续磷酸化激活。抗体芯片技术可以在肿瘤样本中同时筛查几十个RTK的磷酸化状态,发现驱动肿瘤生长的关键激酶异常,为靶向用药选择提供依据。泛素化层面,PROTAC技术正在成为克服激酶抑制剂耐药的新策略——当肿瘤通过激酶突变产生耐药后,PROTAC可以直接降解整个激酶蛋白,绕过突变位点的结合问题。 (2)神经退行性疾病 tau蛋白的过度磷酸化是阿尔茨海默病神经原纤维缠结的主要成分。正常tau蛋白结合微管维持神经元轴突运输,过度磷酸化后tau从微管上解离,自身聚集形成成对螺旋丝,最终导致微管崩解和神经元死亡。除了tau,α-突触核蛋白的磷酸化修饰与帕金森病的路易小体形成密切相关,Huntingtin蛋白的聚集涉及多种PTM的协同调控。自噬-溶酶体通路中关键蛋白的泛素化和乙酰化状态,直接影响错误折叠蛋白的清除效率。 (3)免疫与炎症 TLR信号通路中,多个接头蛋白和转录因子的泛素化和磷酸化级联反应决定了天然免疫应答的强度和方向。cGAS-STING通路中,cGAS的泛素化和磷酸化调控其DNA传感活性;巨噬细胞的M1/M2极化状态,与组蛋白乙酰化、乳酸化等表观修饰的重编程密切相关。在炎症性肠病(IBD)中,肠上皮细胞和免疫细胞的PTM异常与慢性炎症的持续和复发直接相关。 (4)心血管与代谢性疾病 在动脉粥样硬化中,血管内皮细胞和巨噬细胞的炎症信号激活涉及NF-κB通路的磷酸化和泛素化调控。心肌缺血再灌注损伤中,心肌细胞的代谢酶琥珀酰化和乳酸化水平剧烈变化,影响心肌能量代谢和细胞死亡程序。在糖尿病和非酒精性脂肪肝中,高血糖驱动的蛋白质过度琥珀酰化和乳酸化,连接了代谢应激和慢性炎症——这正是代谢性疾病并发症进展的分子基础。 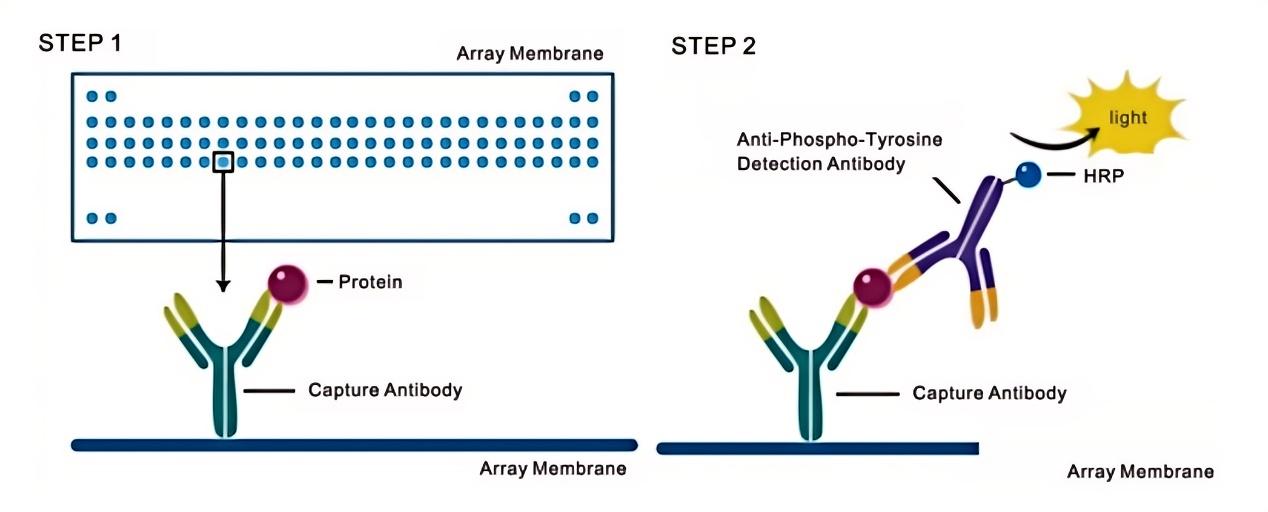 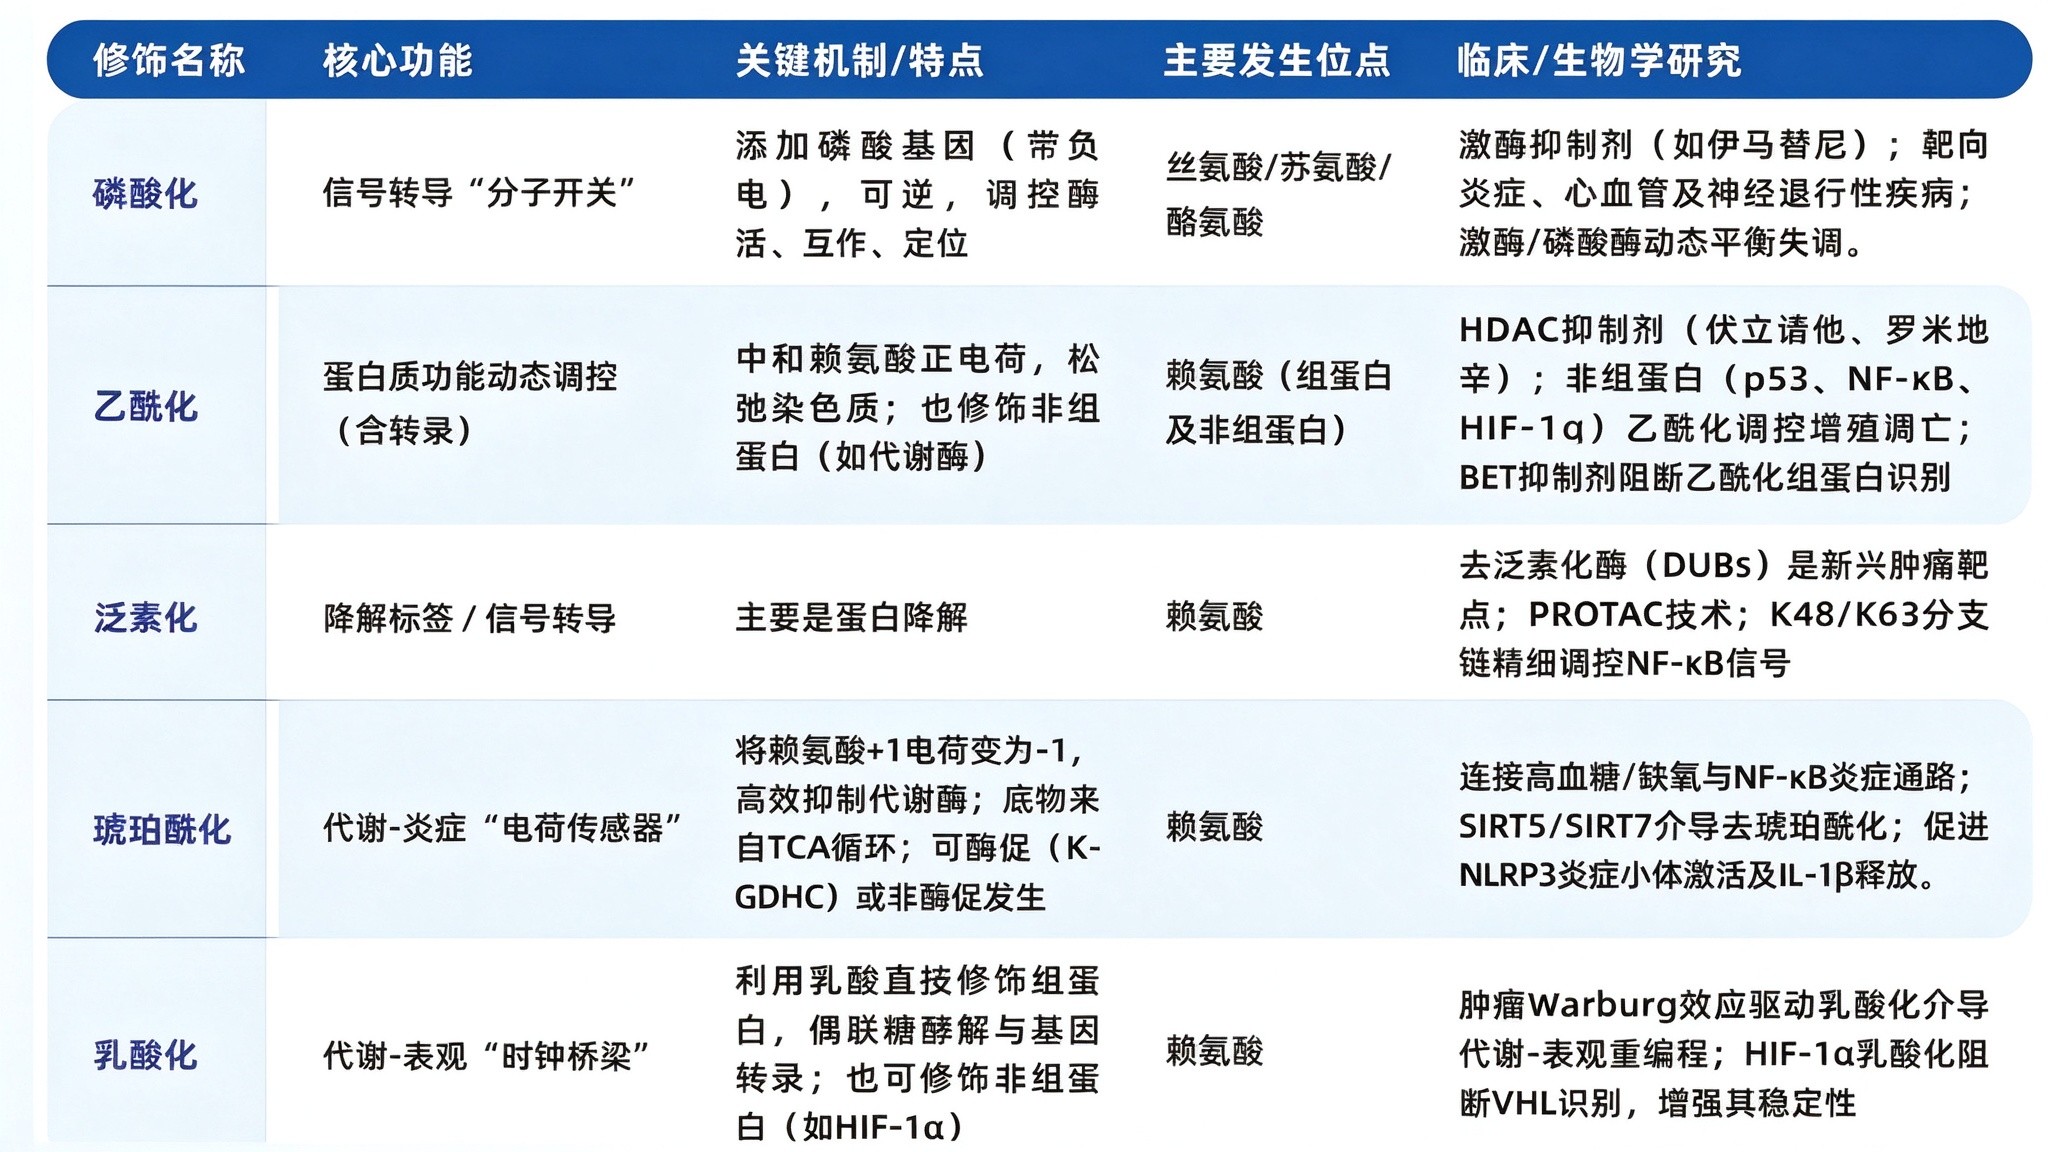 |
 回复此楼
» 猜你喜欢
 极限拉扯,如何抉择
已经有10人回复
-
入职后第一次管课题组的专利缴费,对账才发现官费比别人多掏了一倍
已经有6人回复
-
OpenAI又攻克数学难题了,离AI做有机合成还有多远?
已经有8人回复
-
课题组会帮你通过考核么?
已经有6人回复
-
售一区SCI文章T0P,我:8O.551.O54,科目全,可十急
已经有9人回复
-
售SCI一区T0P文章,我:8.O55.1.O.54,科目全,可十急
已经有8人回复
-
售SCI一区文章,我:8O5.5.1.O5.4,科目全,可伽急
已经有10人回复
-
售SCI一区T0P文章,我:8.O55.1.O.54,科目全,可十急
已经有9人回复
-
售SCI一区文章,我:8.O.55.1.O.54,科目齐全,可伽急
已经有7人回复
-
售SCI文章,我:8O5.5.1.O.54,科目齐全,可+急
已经有10人回复
» 本主题相关商家推荐: (我也要在这里推广)
简单回复
2026-10-12 18:40
回复
乐备实LabEx(金币+1): 谢谢参与

2026-10-12 19:43
回复
乐备实LabEx(金币+1): 谢谢参与
lymjjh4楼
2026-10-12 20:24
回复
乐备实LabEx(金币+1): 谢谢参与


